
叶瑞强和范敏锐研究团队合作发现植物“胰岛素”海藻糖-6-磷酸受体及其信号转导机制
植物光合作用产生的糖类,既是其赖以生存的能量与碳源基础,也是调控生长发育、决定产量品质的关键信号开关。其中,海藻糖-6-磷酸(T6P)被称为植物“胰岛素”,它能够反映植物体内蔗糖水平,精准调控糖分分配、营养物质积累以及开花、分枝等关键性状。尤为引人注目的是,施用一种能进入植物细胞、转化为T6P的前体物质DMNB-T6P,可以显著提高小麦等作物的产量。但长期以来,科学界一直不清楚:植物究竟如何识别和传递T6P信号,又是如何通过它调控代谢“总枢纽”SnRK1的活性?
北京时间10月14日,中国科学院分子植物科学卓越创新中心叶瑞强研究团队与范敏锐研究团队联合攻关,破解了这一核心谜题。研究首次证实,一种本身没有催化活性的“假酶”——Ⅱ型海藻糖-6-磷酸合酶(TPS-II)正是科学界长期寻找的T6P直接受体。团队还完整揭示了TPS-II感知T6P信号、调控SnRK1,进而重编程下游代谢的分子机制。这一突破性发现补齐了植物碳信号传导通路的关键一环,也为作物产量提升与高碳汇植物创制提供了全新的分子靶点与理论支撑。
此前有研究认为,T6P可直接结合SnRK1的催化亚基,并通过抑制上游激酶对其磷酸化来降低其活性,本研究推翻了这一传统认知。研究人员创新性地采用肽段局部稳定性分析(PELSA)等化学生物学技术,锁定了T6P的直接结合蛋白TPS-II。进一步研究发现,TPS-II在结合T6P后会发生构象变化,从而促进其与SnRK1催化亚基KIN10/11的直接相互作用。这套机制可以通俗地理解为“一把钥匙开一把锁”:当植物处于低糖(碳源不足)状态时,T6P含量较低,TPS-II通过N端结构域发生二聚化,并借助跨亚基的N-C结构域相互“拉住”,维持自抑制的“锁定”状态,相当于自己踩住刹车;而当碳源充足、T6P含量升高时,T6P如同一把专属钥匙与TPS-II的N端结合,触发蛋白构象重塑,释放出被束缚的C端,使TPS-II的N端关键残基与N-C连接区充分暴露,进而招募并结合SnRK1抑制其激酶活性,从而使植物激活合成代谢、抑制过度分解代谢,让碳供给水平与生长发育及物质能量消耗精准匹配,维持碳代谢与能量平衡。
研究还证实,TPS-II作为植物体内识别T6P的关键受体,承担着调控植株生长与代谢稳态的核心功能,其功能缺失会导致植株出现严重的代谢和生长异常。进化分析进一步显示,从藻类到高等开花植物,TPS-II感知T6P、自抑制以及结合SnRK1的关键功能位点均高度保守。这说明,T6P-TPS-II-SnRK1信号轴是一条起源于植物进化早期、在植物界普遍保守的经典碳信号调控通路。该成果不仅填补了植物糖信号感知的核心机制空白,更为未来创制跨物种的植物“胰岛素”类似物、精准调控作物生长与产量开辟了全新途径。
中国科学院分子植物科学卓越创新中心博士后孙彤、李文娟,博士生刘新元、李恺睿和张晓婕为共同第一作者,向双路、陈铭阳与研究生刘思雨也作出重要贡献,叶瑞强研究员和范敏锐研究员为论文共同通讯作者。
论文链接:https://doi.org/10.1016/j.cell.2026.09.016
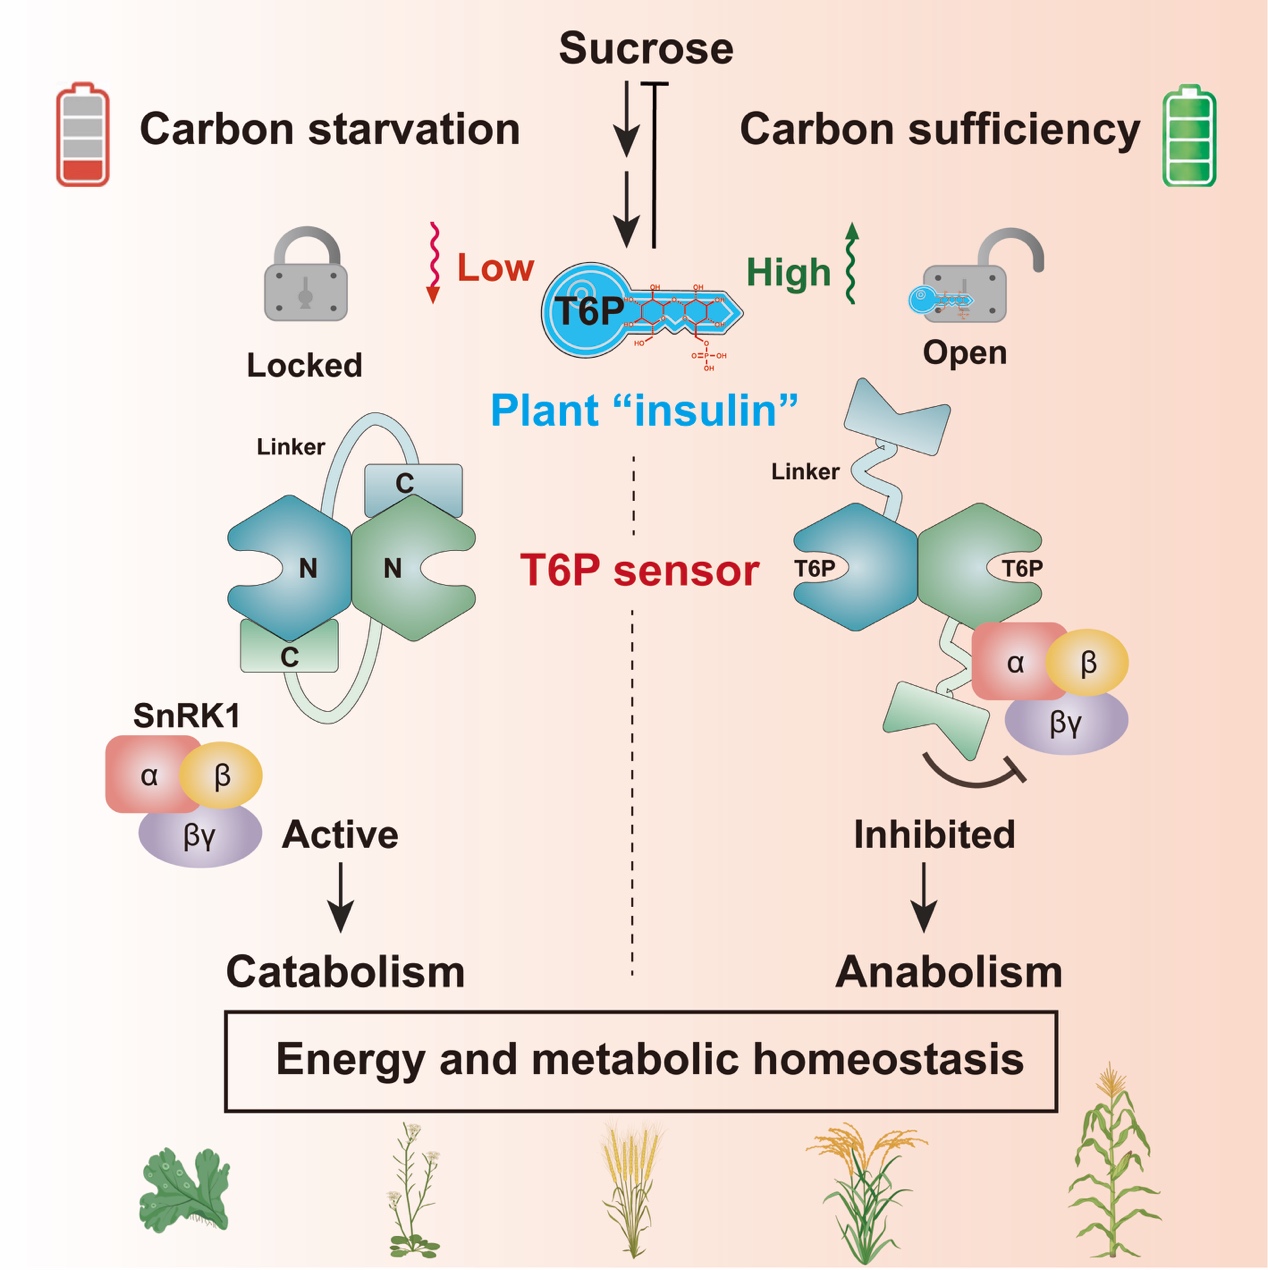
图1. T6P感知与信号转导机制模式图。
Copyright © 2002-
中国科学院分子植物科学卓越创新中心 版权所有
地址:中国上海枫林路300号(200032)
电话:86-21-54924000
传真:86-21-54924015
Email: webmaster@cemps.ac.cn


